Природные пептидные последовательности обычно состоят из 20 природных белковых аминокислот, которые широко используются при доставке лекарств и лечении заболеваний из-за их низкой токсичности, низкой иммуногенности, высокой тканевой проницаемости и легкой синтетической модификации. Однако пептиды легко разлагаются различными протеазами и имеют высокую скорость клиренса, что приводит к быстрому метаболизму, плохой стабильности и короткому периоду полураспада in vivo, что затрудняет разработку и применение пептидоподобных препаратов. Эти проблемы можно в некоторой степени решить за счет использования неприродных аминокислот во время разработки полипептида. Например, введение аминокислоты D-формы изменяет конформацию полипептида, тем самым делая модифицированный полипептид менее восприимчивым к гидролизу протеолитическими ферментами.
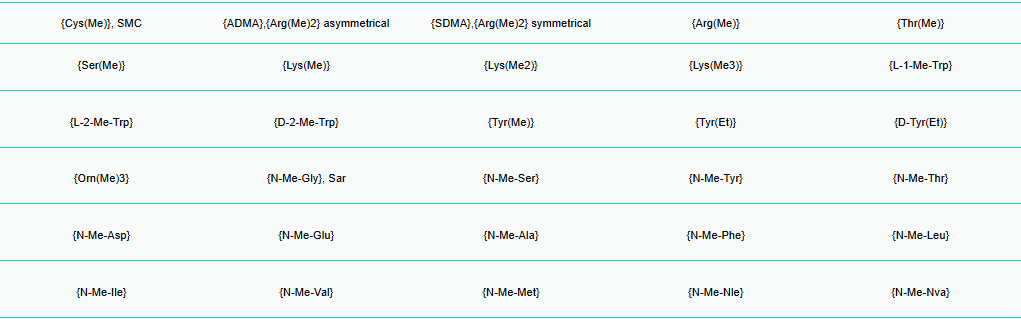
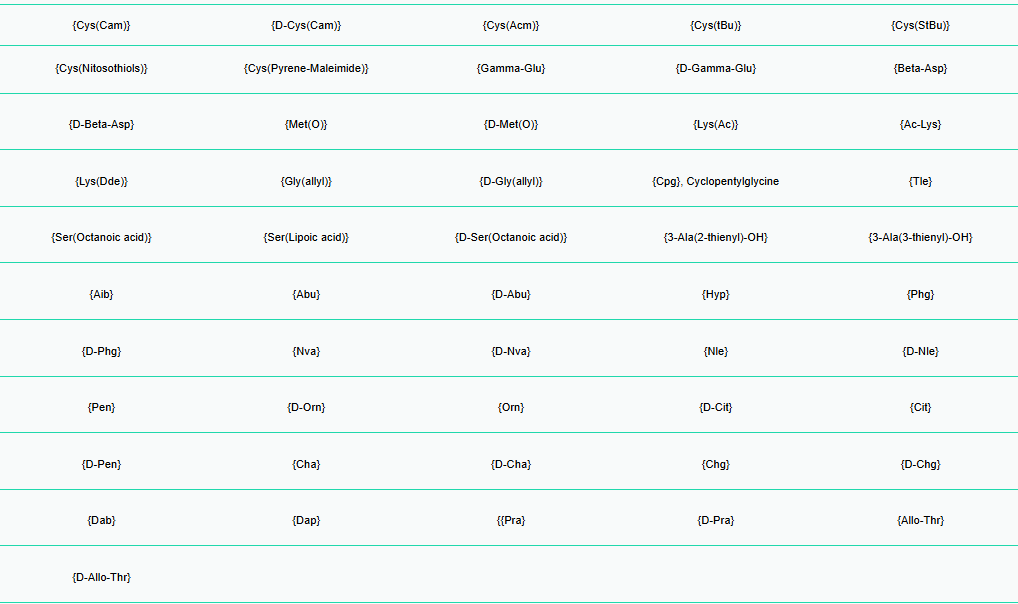
Solid Biology имеет богатую библиотеку неприродных аминокислот, которая может предоставить вам широкий спектр услуг по синтезу полипептидов неприродных аминокислот, в том числе: N-метиламинокислоты (N-метиламинокислоты), неприродные аминокислоты (неприродные аминокислоты), ацетиллизин (ацетиллизин), бета-аланин (β-Ala), аминобензойная кислота (парааминобензойная кислота), амидирование (амидирование), ацетилирование (), Abu, цитруллин (цитруллин), Acm, диметил-лизин (диметиллизин), гидроксипролин (гидроксипролин, Hyp), метил-лизин (метиллизин), меркаптопропионовая кислота (меркаптопропионовая кислота), нитро-тирозин (нитротирозин), норлейцин (норлейцин, Nle), пироглутаминовая кислота (пироглутаминовая кислота, Pyr), карбобензоксил (карбонил, Z), янтарная кислота (succinic acid), сульфурилирование (сульфонилирование) и др.
D-аминокислоты
Реакции протеазного гидролиза обычно стереоспецифичны. Введение аминокислоты D-формы изменяет конфигурацию полипептида, тем самым делая модифицированный полипептид менее восприимчивым к гидролизу протеолитическими ферментами. Полезным методом является замена аминокислот на С- и N-концах полипептидной цепи аминокислотами D-формы, или замена аминокислотных остатков с плохой стабильностью пептидной связи, или замена всех аминокислот. Когда полипептид не подлежит замене определенной последовательностью, его можно связать с пептидом D-формы для улучшения протеазной стабильности пептида.
Пептиды D-аминокислот имеют множество преимуществ, таких как:
1) Некоторые полипептиды, содержащие аминокислоты D-типа, обладают большим биологическим потенциалом.
Омега-агатоксины, представляющие собой D-серин в положении 46. Пептиды IVB и IVC ингибируют кальциевые каналы Р-типа в клетках Пуркинье мозжечка крысы примерно в 4 раза сильнее, чем изоформы L-серина. Другим примером является лягушкаборфин (дерморфин), выделенный из кожи южноамериканских древесных лягушек. Лягушачий борфин в тысячу раз более эффективен, чем морфин, в облегчении глубокой и длительной анальгезии. Вторая аминокислота этого 7-пептида — D-аланин. Однако изомер с L-аланином в этом положении не обладает биологической активностью.
2) Полипептид аминокислоты D-типа устойчив к деградации протеазами.
Пептидная связь, образованная аминокислотой D-типа, обладает более сильной устойчивостью к ферментам, чем аминокислота L-типа. Например, когда аминоконец пифина лягушки (дерморфина) представляет собой Tyr-D-Ala, он может противостоять гидролизу аминопептидазы, но если это пептид L-типа, он будет быстро расщепляться. Модифицированный полипептид будет более стабильным, более устойчивым к протеазному гидролизу и при этом сохранит те же связывающие свойства, что и исходный L-полипептид. Исследования показали, что замена аминокислот с обеих сторон некоторых полипептидов MUC2 на аминокислоты D-типа по-прежнему сохраняет его антигенные свойства и ферментативную стабильность.
3)D-аминокислоты можно рассматривать как сигнальные молекулы.
Бактерии холеры используют рацемазу для преобразования больших количеств соответствующих аминокислот в L-форме в D-метионин и D-лейцин. Эта D-аминокислота предупреждает белки стенок клетки, тем самым замедляя выработку пептидогликана. Скорее всего, такая изомеризация пептида достигается по механизму депротонирования-протонирования альфа-углерода. Этот механизм установлен для рацемазы нескольких аминокислот, таких как пролин, аспартат, глутаматрацемаза, и в этой реакции участвуют оба цистеина активного центра. Рацемаза располагается в межстеночном пространстве внутренней и наружной мембран, и когда клетка перестает расти, инициируется синтез D-аминокислот.
Твердый биологический может предоставить вам 20 видов натуральных аминокислот, соответствующих всем D-аминокислотам, в том числе: D-Ala, D-Arg, D-Asp, D-Asn, D-Cys, D-Glu, D-Gln, D-His, D-Allo-Ile, D-Leu, D-Lys, D-Met, D-Pro, D-Phe, D-Ser, D-Tyr, D-Thr, D-Trp, D-Val.
Ретро-инверсный полипептид
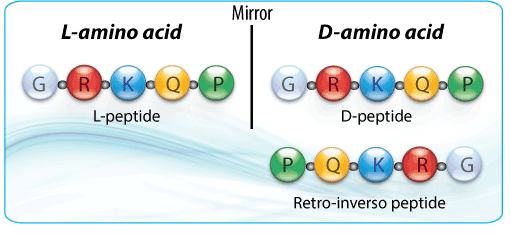
Ретро-инверсо-пептиды собираются из аминокислот D-формы в порядке, обратном их нативной последовательности L-полипептида. ретро-инверсные пептиды получают путем замены аминокислот D-формы на нормальные аминокислоты L-формы и изменения ориентации основной цепи полипептида на обратную. Исходная пространственная ориентация всех боковых цепей не изменилась. ретро-инверсо - основы пептида меняются местами, хиральность аминокислот в последовательности сохраняется. Это приведет к образованию комплементарных топохимических реакций боковой цепи между аналогом и нативным полипептидом L-формы.
бета-аминокислоты
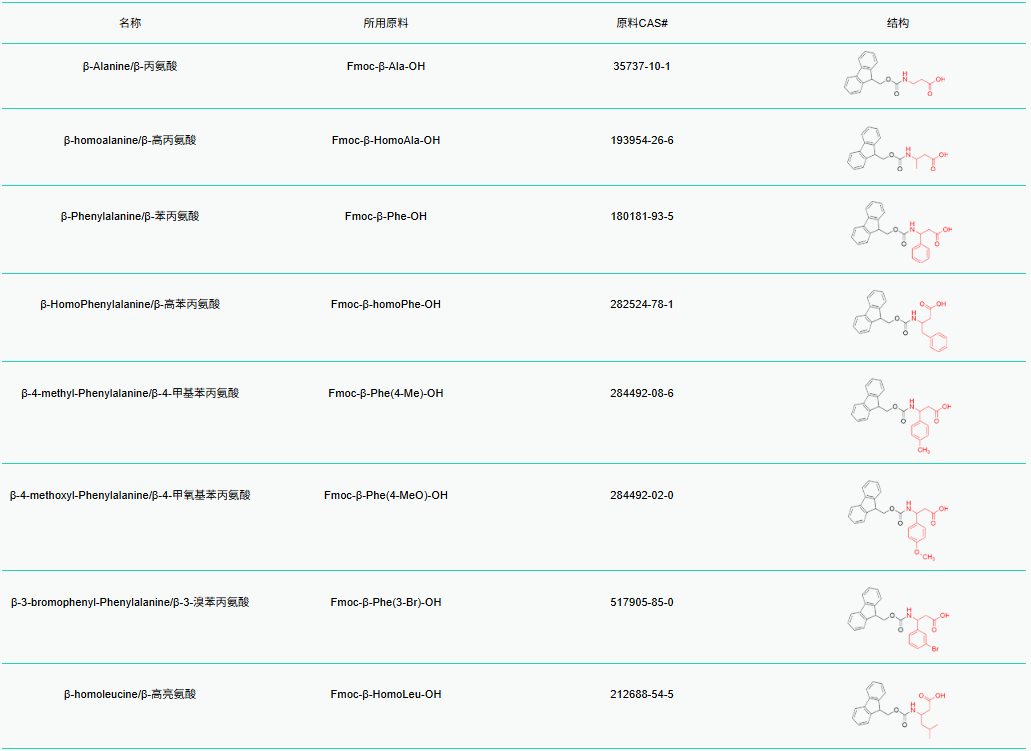
природные аминокислоты обычно представляют собой альфа-аминокислоты, то есть амино- и карбоксильные группы аминокислот присоединены к атому С, тогда как бета-аминокислоты представляют собой аминокислоты, а карбоксильные группы аминокислот присоединены к двум атомам С. Если аминокислоты в полипептиде заменить на β-аминокислоты, общая конформация полипептида может измениться, и молекулы воды в исходном центре протеазного расщепления не могут образовывать водородные связи с амидной связью, что не способствует расщеплению амидной связи протеазой и, таким образом, обладает более сильной устойчивостью к гидролизу.
N-метил аминокислота
другие специальные аминокислоты
Время публикации: 31 августа 2026 г.